Năm 1835, một chàng trai trẻ 26 tuổi đặt chân lên quần đảo Galápagos, nằm chơi vơi giữa Thái Bình Dương, cách đất liền Nam Mỹ gần 1.000 km.
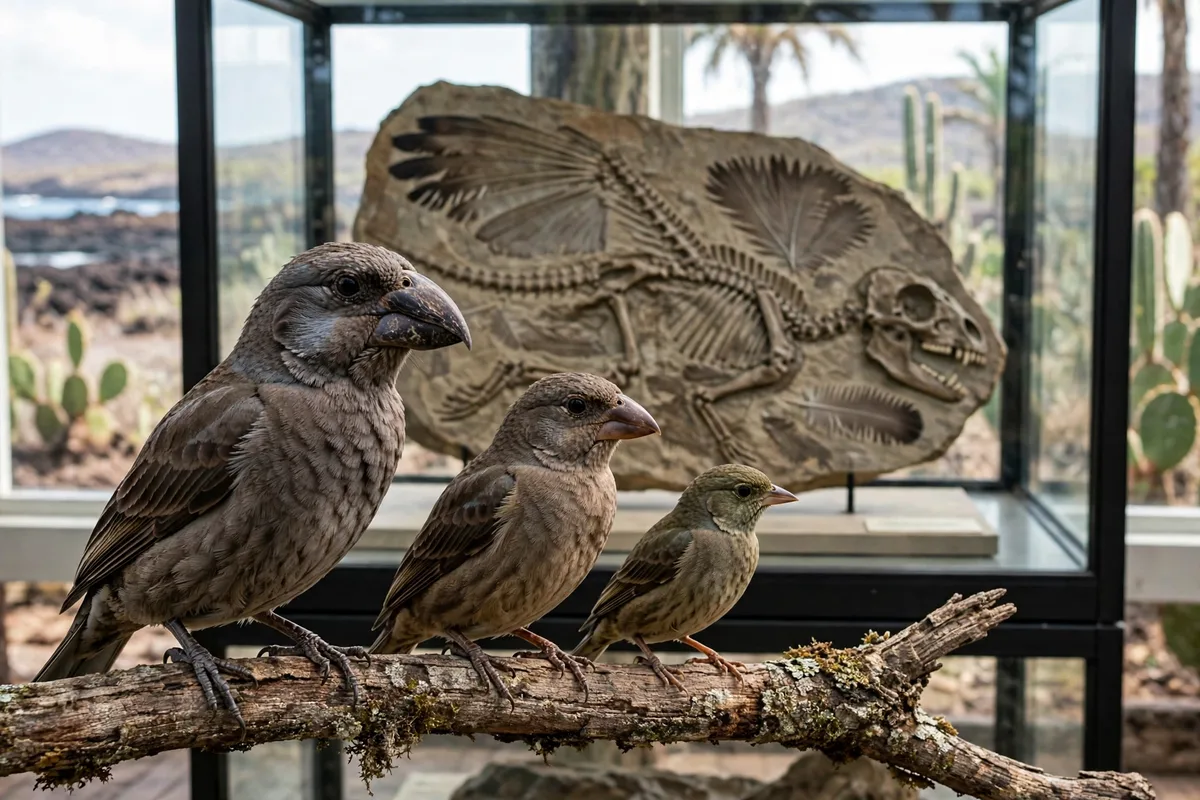
Chàng trai ấy là Charles Darwin, và trên các hòn đảo núi lửa khô cằn này, ông bắt gặp một điều kì lạ: những con chim sẻ trông giống hệt nhau, nhưng mỏ của chúng thì không con nào giống con nào — con mỏ to như kìm bẻ hạt, con mỏ nhỏ nhọn như kim gắp côn trùng, con mỏ cong như dụng cụ khều mật hoa.
Vì sao cùng một họ chim, sống cách nhau chỉ vài chục cây số biển, lại mang những chiếc mỏ khác nhau đến vậy?
Câu hỏi tưởng chừng nhỏ bé ấy đã mở ra một trong những cuộc điều tra vĩ đại nhất của khoa học — cuộc điều tra về nguồn gốc các loài, mà hôm nay chúng ta gọi là thuyết tiến hóa.
Bài viết này sẽ đi theo dấu vết của Darwin: từ những chiếc mỏ chim sẻ tới quy luật chọn lọc tự nhiên, từ vốn gen của quần thể tới công thức Hardy–Weinberg, từ hóa thạch 150 triệu năm tuổi tới câu chuyện loài mới ra đời — kèm ví dụ tính toán từng bước và bài tập có đáp án để bạn tự kiểm tra mình.
1. Những chiếc mỏ biết nói: vụ án mở đầu ở Galápagos
Quần đảo Galápagos gồm nhiều đảo núi lửa nhỏ, mỗi đảo có khí hậu và thức ăn khác nhau: đảo này nhiều hạt cứng, đảo kia nhiều côn trùng, đảo khác có hoa xương rồng nở quanh năm.
Trên các đảo ấy sống 13 loài chim sẻ mà ngày nay ta gọi là sẻ Darwin — tất cả đều là hậu duệ của một loài tổ tiên duy nhất bay tới quần đảo này cách đây khoảng 2 triệu năm.
Tổ tiên chung đó đã phân tán ra các đảo khác nhau, và mỗi nhóm lại đối mặt một "thực đơn" khác nhau.
Ở đảo nhiều hạt cứng, những cá thể mỏ to, khỏe bẻ được hạt sẽ sống sót và sinh sản nhiều hơn; ở đảo nhiều côn trùng, mỏ nhỏ nhọn mới là lợi thế.
Qua hàng nghìn thế hệ, sự khác biệt nhỏ ban đầu tích lũy dần thành 13 loài riêng biệt, mỗi loài một kiểu mỏ chuyên dụng — mỏ to dày để bẻ hạt, mỏ vừa để ăn hạt mềm, mỏ nhỏ nhọn để bắt côn trùng, mỏ cong để hút mật hoa.
Đây chính là hiện tượng phóng xạ thích nghi: từ một loài tổ tiên, nhiều loài mới hình thành để chiếm các ổ sinh thái khác nhau.
Bằng chứng thuyết phục nhất không đến từ thời Darwin, mà từ gần 150 năm sau.
Từ năm 1976, vợ chồng nhà khoa học Peter và Rosemary Grant theo dõi từng con sẻ trên đảo Daphne Major, đo mỏ của chúng tới từng phần mười milimét.
Năm 1977, một đợt hạn hán kéo dài 18 tháng làm hạt mềm biến mất gần hết, chỉ còn hạt to và cứng.
Kết quả: khoảng 85% số sẻ mỏ nhỏ chết vì không bẻ được hạt, trong khi sẻ mỏ to sống sót và sinh sản.
Chỉ sau một thế hệ, độ sâu mỏ trung bình của quần thể đã tăng thêm 0,5 mm.
Chọn lọc tự nhiên không còn là suy luận trên giấy — nó đã được đo đếm trực tiếp, ngay trước mắt các nhà khoa học.
Muốn hiểu vì sao mỗi lần sinh sản lại tạo ra đủ loại giao tử khác nhau để chọn lọc có "nguyên liệu" mà làm việc, bạn có thể xem lại bài công thức tính số loại giao tử: một cơ thể có n cặp gen dị hợp sẽ tạo ra 2n loại giao tử khác nhau.
2. Darwin đã giải thích ra sao? Bốn trụ cột của học thuyết Darwin
Trước Darwin, nhà tự nhiên học Lamarck từng đề xuất rằng sinh vật thay đổi do "dùng – phế": hươu cao cổ vươn cổ ăn lá cao nên cổ dài dần, rồi truyền cổ dài cho con.
Ý tưởng này sai ở điểm cốt lõi: những thay đổi do tập luyện trong đời sống cá thể không ghi vào gen và không di truyền được.
Darwin đưa ra lời giải khác hẳn, dựa trên bốn quan sát và suy luận mà đến nay vẫn đứng vững.
Trụ cột thứ nhất là biến dị di truyền: trong cùng một quần thể, các cá thể không bao giờ giống hệt nhau — chiều cao, màu sắc, độ dài mỏ, khả năng chịu hạn đều khác nhau, và phần lớn sự khác biệt ấy có cơ sở di truyền.
Trụ cột thứ hai là đấu tranh sinh tồn: sinh vật sinh ra nhiều con hơn mức môi trường nuôi nổi, nên các cá thể phải cạnh tranh thức ăn, nơi ở, bạn tình — không phải ai cũng sống sót để sinh sản.
Trụ cột thứ ba là chọn lọc tự nhiên: những cá thể mang biến dị có lợi trong môi trường cụ thể sẽ sống sót và để lại nhiều con hơn; biến dị có lợi vì thế ngày càng phổ biến trong quần thể.
Trụ cột thứ tư là di truyền: con cái thừa hưởng đặc điểm của bố mẹ, nên ưu thế ấy tích lũy qua các thế hệ và cuối cùng tạo ra loài mới.
Bốn trụ cột này gộp lại thành một câu nói ngắn: chọn lọc tự nhiên là quá trình phân hóa khả năng sống sót và sinh sản của các cá thể mang kiểu gen khác nhau trong quần thể.
Có một điểm rất dễ hiểu lầm mà bạn cần ghi nhớ ngay: chọn lọc tự nhiên KHÔNG tạo ra biến dị mới.
Biến dị xuất hiện trước, do đột biến và giao phối tạo ra; chọn lọc chỉ đóng vai trò "người sàng lọc", giữ lại cái có lợi và loại bỏ cái có hại trong hoàn cảnh cụ thể.
Một chiếc mỏ dày không "tốt" một cách tuyệt đối — nó chỉ tốt khi quanh đó toàn hạt cứng; gặp năm mưa thuận, hạt mềm đầy rẫy, mỏ nhỏ lại nhanh nhẹn hơn.
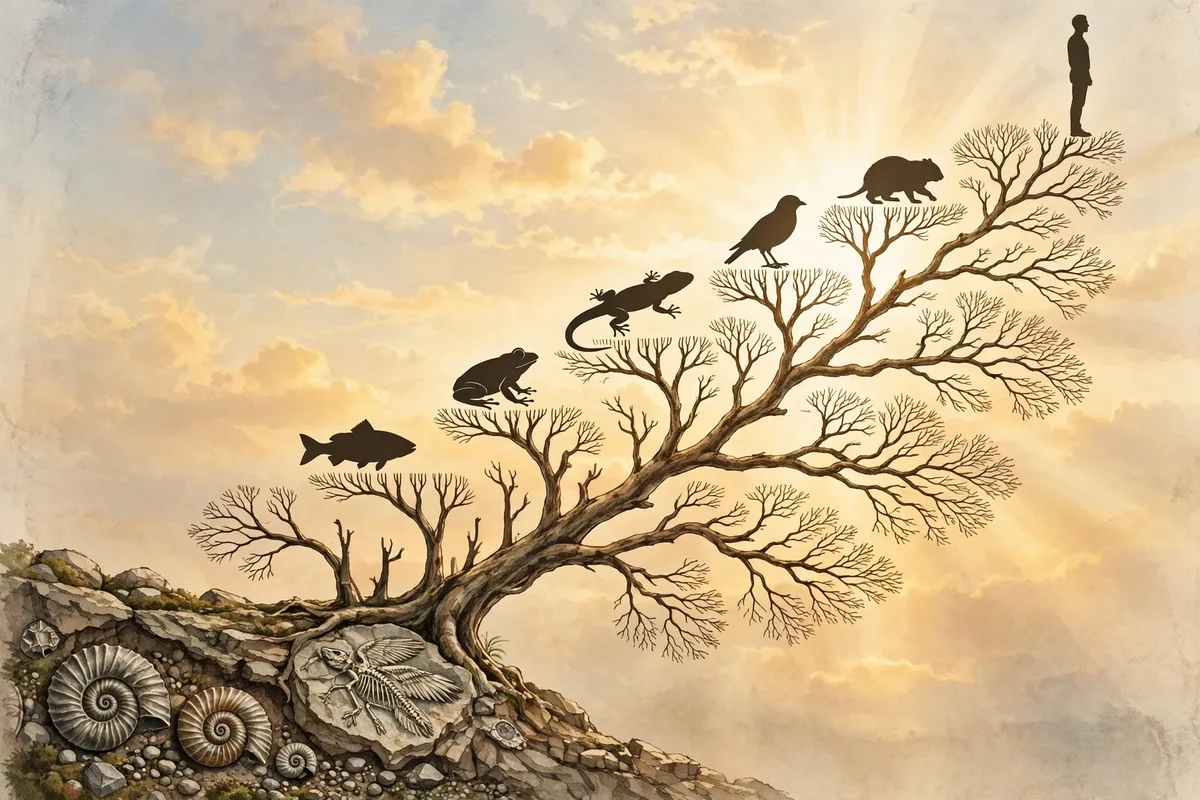
Vì vậy, đừng bao giờ nói loài này "cao cấp" hơn loài kia: tiến hóa không có bậc thang từ thấp lên cao, chỉ có sự thích nghi với từng hoàn cảnh riêng.
3. Từ Darwin đến thuyết tiến hóa tổng hợp hiện đại
Darwin đúng về cơ chế chọn lọc, nhưng ông chưa biết biến dị di truyền được theo cách nào — thời ông chưa ai biết đến gen và quy luật Mendel.
Đến giữa thế kỉ 20, các nhà khoa học kết hợp học thuyết Darwin với di truyền học và đặc biệt là di truyền học quần thể, tạo nên học thuyết tiến hóa tổng hợp hiện đại — khung lí thuyết mà sách giáo khoa Sinh học 12 đang dùng.
Học thuyết này bổ sung cho Darwin hai điều quan trọng.
Thứ nhất, đơn vị của tiến hóa không phải cá thể mà là quần thể.
Một con sẻ mỏ to không "tiến hóa" trong đời nó; điều thay đổi là tần số alen và tần số kiểu gen của cả quần thể sẻ qua các thế hệ.
Quần thể là một kho gen chung gọi là vốn gen — tập hợp tất cả các alen của mọi gen trong quần thể tại một thời điểm.
Tiến hóa, theo định nghĩa hiện đại, chính là sự thay đổi tần số alen và thành phần kiểu gen của quần thể qua các thế hệ, dẫn tới hình thành đặc điểm thích nghi mới và cuối cùng là loài mới.
Thứ hai, nguồn nguyên liệu của tiến hóa được xác định rõ ràng: đột biến tạo ra alen mới (nguyên liệu sơ cấp), còn giao phối — bao gồm cả quá trình giảm phân và thụ tinh — sắp xếp lại các alen cũ thành vô số tổ hợp mới (nguyên liệu thứ cấp, hay biến dị tổ hợp).
Muốn hình dung vì sao chỉ một lần giảm phân đã tạo ra hàng nghìn loại giao tử khác nhau, hãy xem bài công thức tính số loại giao tử: với n cặp gen dị hợp, số loại giao tử là 2n.
Còn ở cấp độ gen, mọi biến dị đều bắt đầu từ sự thay đổi trình tự nuclêôtit — bạn có thể ôn lại cách tính số nuclêôtit của gen và chiều dài gen để thấy một gen dài hàng nghìn nuclêôtit thì "đất" cho đột biến là rất lớn.
Học thuyết tiến hóa tổng hợp chia tiến hóa thành hai cấp độ.
Tiến hóa nhỏ là những thay đổi tần số alen trong phạm vi một quần thể qua các thế hệ — như độ sâu mỏ sẻ tăng 0,5 mm sau một mùa hạn.
Tiến hóa lớn là quá trình hình thành loài mới và các nhóm phân loại trên loài (chi, họ, bộ...) trong thời gian địa chất dài — như cả họ chim sẻ Darwin tách ra từ một tổ tiên chung.
Tiến hóa nhỏ diễn ra liên tục sẽ tích lũy thành tiến hóa lớn; không có ranh giới phép màu nào ngăn cách hai cấp độ này.
4. Năm nhân tố làm thay đổi vốn gen của quần thể
Nếu không có nhân tố nào tác động, tần số alen của quần thể sẽ đứng yên mãi — đó chính là nội dung định luật Hardy–Weinberg ở mục 6.
Trên thực tế, có năm nhân tố liên tục khuấy động vốn gen, và mỗi nhân tố làm việc theo một cách riêng.
Đột biến là nguồn tạo ra alen mới — nguyên liệu sơ cấp của mọi quá trình tiến hóa.
Tần số đột biến của từng gen thường rất nhỏ, chỉ khoảng 10−6 đến 10−4 mỗi thế hệ, nên đột biến làm thay đổi tần số alen rất chậm chạp và không theo hướng xác định.
Nhưng đừng vì thế mà coi thường nó: mỗi sinh vật có hàng nghìn gen, mỗi quần thể có hàng nghìn cá thể, nên tổng số đột biến xuất hiện trong quần thể mỗi thế hệ là rất lớn.
Không có đột biến thì không có alen mới, và chọn lọc cũng chẳng còn gì để chọn.
Di – nhập gen là sự trao đổi alen giữa các quần thể qua di cư của cá thể, giao tử hoặc bào tử.
Cá thể nhập cư mang đến những alen mà quần thể nhận chưa từng có, làm phong phú vốn gen; cá thể xuất cư mang alen đi, có thể làm nghèo vốn gen.
Di – nhập gen làm thay đổi cả tần số alen lẫn thành phần kiểu gen, nhưng nó có một tác dụng ngược đời: dòng gen liên tục sẽ "dung hòa" vốn gen của các quần thể, làm giảm sự khác biệt giữa chúng và vì thế hạn chế quá trình hình thành loài mới.
Giao phối không ngẫu nhiên gồm tự phối, tự thụ phấn, giao phối cận huyết và giao phối có lựa chọn.
Đây là nhân tố đặc biệt: nó KHÔNG làm thay đổi tần số alen, nhưng làm thay đổi tần số kiểu gen theo hướng tăng dần tỉ lệ đồng hợp, giảm dần tỉ lệ dị hợp.
Hậu quả là quần thể mất dần sự đa dạng di truyền và dễ bộc lộ các gen lặn có hại — đó là lí do sinh học đằng sau việc cấm kết hôn cận huyết và hiện tượng thoái hóa giống khi tự thụ phấn nhiều đời ở cây trồng.
Các yếu tố ngẫu nhiên, hay còn gọi là phiêu bạt di truyền, là những biến cố tình cờ làm thay đổi tần số alen không theo hướng xác định nào: bão lũ, cháy rừng, dịch bệnh, hay đơn giản là một nhóm nhỏ tách ra lập quần thể mới.
Phiêu bạt di truyền tác động mạnh nhất ở quần thể nhỏ — một alen có lợi vẫn có thể biến mất chỉ vì cá thể mang nó xui xẻo chết sớm, và một alen trung tính vẫn có thể trở nên phổ biến chỉ nhờ may mắn.
Hai trường hợp đặc biệt của phiêu bạt di truyền là hiệu ứng cổ chai (quần thể bị thu hẹp đột ngột rồi phục hồi từ ít cá thể) và hiệu ứng kẻ sáng lập (một nhóm nhỏ tách ra lập quần thể mới với vốn gen không đại diện cho quần thể gốc).
Chọn lọc tự nhiên là nhân tố duy nhất làm thay đổi tần số alen theo một hướng xác định — hướng thích nghi với môi trường.
Nó tác động trực tiếp lên kiểu hình, gián tiếp lên kiểu gen, và là nhân tố định hướng quá trình tiến hóa.
Muốn bấm nhanh các phép tính tần số alen kiểu 1200 : 2000 hay 0,55 × 0,55 khi làm bài tập, bạn có thể kiểm tra lại bằng máy tính Casio online để khỏi sai số ở bước tính tay.
| Nhân tố tiến hóa | Làm thay đổi tần số alen? | Làm thay đổi tần số kiểu gen? | Có hướng xác định? |
|---|---|---|---|
| Đột biến | Có, chậm chạp | Có | Không |
| Di – nhập gen | Có | Có | Không |
| Giao phối không ngẫu nhiên | Không | Có (tăng đồng hợp, giảm dị hợp) | Không |
| Các yếu tố ngẫu nhiên | Có | Có | Không |
| Chọn lọc tự nhiên | Có | Có | Có — hướng thích nghi |
Bảng trên là "tấm bản đồ" để bạn tra cứu nhanh khi làm bài tập lí thuyết.
Chỉ cần nhớ hai dòng đặc biệt: giao phối không ngẫu nhiên là nhân tố duy nhất không đổi tần số alen, và chọn lọc tự nhiên là nhân tố duy nhất có hướng.
5. Ba hình thức chọn lọc tự nhiên
Chọn lọc tự nhiên không phải lúc nào cũng đẩy quần thể đi theo một hướng.
Tùy vào môi trường, nó có thể giữ nguyên, dịch chuyển hay xé đôi quần thể — tương ứng với ba hình thức sau.
Chọn lọc ổn định giữ lại các cá thể có kiểu hình trung bình, loại bỏ hai thái cực.
Ví dụ kinh điển là cân nặng trẻ sơ sinh ở người: trẻ quá nhẹ dễ suy dinh dưỡng, trẻ quá nặng khó sinh, nên trẻ có cân nặng trung bình có tỉ lệ sống sót cao nhất.
Hình thức này làm giảm biến dị của quần thể và thường xảy ra khi môi trường ổn định trong thời gian dài.
Chọn lọc vận động ưu ái một phía của phổ biến dị, kéo toàn bộ quần thể dịch chuyển theo một hướng.
Ví dụ nổi tiếng nhất là bướm đêm Biston betularia ở Anh: trước Cách mạng công nghiệp, dạng cánh sáng chiếm đa số vì ngụy trang tốt trên thân cây phủ địa y sáng màu.
Khi khói than làm thân cây đen lại, dạng cánh sẫm màu vốn hiếm hoi bỗng trở nên khó bị chim phát hiện — đến năm 1895, dạng sẫm màu đã chiếm khoảng 95% quần thể quanh thành phố Manchester.
Khi luật kiểm soát ô nhiễm làm thân cây sáng trở lại, cán cân lại đảo chiều: dạng cánh sáng dần chiếm ưu thế.
Cùng một ví dụ, chọn lọc đã đổi hướng hai lần theo môi trường — minh chứng sống động rằng "có lợi" hay "có hại" luôn là tương đối.
Chọn lọc phân hóa ưu ái cả hai thái cực và chống lại kiểu hình trung bình, lâu dần có thể xé một quần thể thành hai nhóm riêng biệt.
Ở chim sẻ Darwin, trong môi trường vừa có hạt rất to vừa có hạt rất nhỏ nhưng thiếu hạt trung bình, sẻ mỏ rất to và sẻ mỏ rất nhỏ đều sống tốt, còn sẻ mỏ trung bình lại không giỏi bẻ loại hạt nào — quần thể dần phân hóa thành hai nhóm.
Chọn lọc phân hóa là cầu nối trực tiếp tới quá trình hình thành loài mới ở mục 8.
6. Định luật Hardy–Weinberg: thước đo quần thể có đang tiến hóa
Năm 1908, nhà toán học G. H. Hardy và bác sĩ W. Weinberg độc lập phát hiện một quy luật đẹp đẽ: trong một quần thể lí tưởng, tần số alen và tần số kiểu gen sẽ giữ nguyên không đổi qua các thế hệ.
Định luật này không mô tả thế giới thực — mà cho ta một "mốc số 0" để so sánh: nếu quần thể thực lệch khỏi mốc đó, tức là nó đang tiến hóa và ta có thể truy ra nhân tố nào đang tác động.
Xét một gen có hai alen A và a, gọi p là tần số alen A, q là tần số alen a.
Vì chỉ có hai alen nên p + q = 1.
Khi giao phối ngẫu nhiên, các alen kết hợp ngẫu nhiên tạo ra ba kiểu gen với tần số: AA = p², Aa = 2pq, aa = q².
Vì đó là toàn bộ các kiểu gen có thể nên p² + 2pq + q² = 1.
Hai công thức này chính là toàn bộ định luật Hardy–Weinberg — ngắn gọn nhưng đủ để giải mọi bài toán tần số alen trong đề thi.
Định luật chỉ nghiệm đúng khi quần thể thỏa mãn 5 điều kiện cùng lúc:
Quần thể phải đủ lớn (về lí tưởng là vô hạn) để phiêu bạt di truyền không đáng kể.
Không có đột biến làm xuất hiện alen mới.
Không có di – nhập gen, tức quần thể hoàn toàn cách li.
Không có chọn lọc tự nhiên tác động lên các kiểu gen.
Các cá thể giao phối hoàn toàn ngẫu nhiên.
Trong tự nhiên, hiếm khi cả 5 điều kiện cùng thỏa mãn — vì vậy hầu như mọi quần thể thực đều lệch khỏi cân bằng Hardy–Weinberg, và độ lệch đó chính là dấu hiệu của tiến hóa đang diễn ra.
Một mẹo tính nhanh rất hay dùng trong đề thi: nếu đề cho tỉ lệ kiểu hình lặn aa, bạn lấy căn bậc hai là ra ngay tần số alen lặn q, rồi suy ra p = 1 − q và toàn bộ tần số kiểu gen.
Ví dụ: quần thể có 9% cá thể mang kiểu hình lặn aa thì q = √0,09 = 0,3; p = 0,7; tần số kiểu gen AA là p² = 0,49 và Aa là 2pq = 0,42.
Ngược lại, nếu đề cho số lượng từng kiểu gen, bạn đếm trực tiếp số alen: tần số alen A = (2 × số cá thể AA + số cá thể Aa) : (2 × tổng số cá thể).
Hai cách tính này sẽ xuất hiện trong các ví dụ ở mục 9 — hãy nắm chắc trước khi đọc tiếp.
7. Bằng chứng tiến hóa: bốn nhóm chứng cứ không thể chối cãi
Tiến hóa không phải một ý kiến — nó là kết luận được chống đỡ bởi bốn nhóm bằng chứng độc lập, đến từ bốn lĩnh vực khác nhau của sinh học.
Bằng chứng hóa thạch là những "trang nhật kí" của lịch sử sự sống, ghi lại các sinh vật đã tuyệt chủng trong các lớp đá trầm tích.
Càng xuống lớp đá sâu (cổ hơn), sinh vật càng đơn giản và càng khác sinh vật hiện đại; càng lên lớp nông (trẻ hơn), sinh vật càng giống ngày nay.
Quý giá nhất là các hóa thạch trung gian: Archaeopteryx sống cách đây khoảng 150 triệu năm, mang cả đặc điểm bò sát (răng, đuôi dài có xương, vuốt ở cánh) lẫn đặc điểm chim (lông vũ, xương đòn) — bằng chứng trực tiếp cho thấy chim tiến hóa từ khủng long.
Tiktaalik, khoảng 375 triệu năm tuổi, có vây mang xương chi và một cái cổ cử động được — nửa cá, nửa động vật bốn chân, đúng vị trí chuyển tiếp từ nước lên cạn.
Bằng chứng giải phẫu so sánh dựa trên cơ quan tương đồng: những cơ quan có cùng nguồn gốc phôi, cùng sơ đồ cấu tạo, dù chức năng khác nhau — cánh tay người, cánh dơi, vây cá voi đều có chung một bộ xương gồm xương cánh tay, xương cẳng tay, xương cổ tay và ngón.
Sự giống nhau về cấu trúc chứng tỏ chúng thừa hưởng từ một tổ tiên chung, rồi mỗi loài biến đổi theo lối sống riêng.
Ngược lại, cơ quan tương tự (cánh chim và cánh côn trùng) giống nhau về chức năng nhưng khác nhau về nguồn gốc — đó là kết quả của tiến hóa hội tụ, khi các loài không họ hàng cùng thích nghi với một môi trường giống nhau.
Cơ quan thoái hóa như ruột thừa ở người, xương chậu ở cá voi hay mắt của loài cá hang tối cũng là bằng chứng: chúng là "di tích" của tổ tiên, nay không còn chức năng hoặc chức năng đã thay đổi.
Bằng chứng phôi sinh học: phôi của cá, gà, lợn và người ở giai đoạn sớm giống nhau đến kinh ngạc — đều có mang phôi, đuôi phôi và tim hai ngăn.
Càng phát triển, phôi các loài mới càng phân hóa khác nhau.
Điều này chỉ có thể giải thích nếu các loài có chung tổ tiên và chương trình phát triển phôi được thừa hưởng từ tổ tiên đó.
Bằng chứng sinh học phân tử là bằng chứng chính xác nhất, đo được bằng con số.
Mọi sinh vật đều dùng chung mã di truyền, chung 20 loại axit amin, chung cơ chế sao chép ADN — sự thống nhất ở cấp độ phân tử là dấu vết của một tổ tiên chung duy nhất.
So sánh trình tự ADN hay prôtêin: hai loài càng ít khác biệt thì tổ tiên chung của chúng càng gần.
Người và tinh tinh giống nhau khoảng 98,8% trình tự ADN — con số này, cùng với bằng chứng hóa thạch, đặt tổ tiên chung của người và tinh tinh vào khoảng 6–7 triệu năm trước.
Muốn hiểu vì sao một khác biệt nhỏ trong trình tự nuclêôtit đã có thể tạo ra một alen mới, bạn có thể xem lại bài công thức tính số nuclêôtit của gen: mỗi gen dài hàng nghìn nuclêôtit nên chỉ cần một nuclêôtit thay đổi cũng đủ tạo ra biến dị di truyền mới.
| Từ vựng | Nghĩa |
|---|---|
| Quần thể | Tập hợp các cá thể cùng loài, cùng sống trong một không gian và thời gian, có khả năng giao phối với nhau |
| Vốn gen | Tập hợp tất cả các alen của mọi gen trong quần thể tại một thời điểm |
| Tần số alen | Tỉ lệ số alen đó trên tổng số alen của gen đang xét trong quần thể |
| Tần số kiểu gen | Tỉ lệ số cá thể có kiểu gen đó trên tổng số cá thể của quần thể |
| Chọn lọc tự nhiên | Quá trình phân hóa khả năng sống sót và sinh sản của các kiểu gen khác nhau trong quần thể |
| Phiêu bạt di truyền | Sự thay đổi tần số alen do các yếu tố ngẫu nhiên, không theo hướng xác định |
| Cách li sinh sản | Các trở ngại ngăn cản các cá thể thuộc các quần thể khác nhau giao phối hoặc sinh con hữu thụ |
| Phóng xạ thích nghi | Hiện tượng từ một loài tổ tiên phân hóa thành nhiều loài khác nhau, thích nghi với các ổ sinh thái khác nhau |
8. Loài mới ra đời như thế nào?
Loài là nhóm các cá thể có khả năng giao phối với nhau trong tự nhiên, sinh ra con hữu thụ, và cách li sinh sản với các nhóm khác.
Định nghĩa này lấy cách li sinh sản làm tiêu chuẩn vàng: hai nhóm còn giao phối sinh con hữu thụ thì vẫn là một loài; đã không thể thì chúng là hai loài riêng biệt.
Quá trình hình thành loài mới thường bắt đầu bằng cách li địa lí: một dãy núi mọc lên, một dòng sông đổi dòng, một nhóm cá thể trôi dạt ra đảo — quần thể bị chia cắt thành hai nhóm không còn trao đổi gen.
Mỗi nhóm sau đó tiến hóa độc lập dưới áp lực chọn lọc khác nhau, tích lũy đột biến khác nhau, trải qua phiêu bạt di truyền khác nhau.
Khi sự khác biệt di truyền đủ lớn, hai nhóm xuất hiện cách li sinh sản — dù có gặp lại nhau cũng không còn giao phối được nữa.
Đó là lúc một loài đã tách thành hai loài.
Cách li sinh sản có nhiều dạng, chia thành hai nhóm lớn.
Cách li trước hợp tử ngăn cản việc tạo thành hợp tử: cách li sinh thái (sống ở nơi khác nhau), cách li thời gian (sinh sản vào mùa khác nhau), cách li tập tính (nghi thức giao phối khác nhau), cách li cơ học (cơ quan sinh sản không tương thích) và cách li giao tử (tinh trùng và trứng không gặp nhau hoặc không thụ tinh được).
Cách li sau hợp tử xảy ra khi hợp tử đã tạo thành nhưng không phát triển được hoặc con lai bất thụ: hợp tử chết sớm, con lai chết non, hoặc con lai sống nhưng không sinh sản được.
Ví dụ nổi tiếng là con la — con của ngựa cái và lừa đực: la khỏe mạnh nhưng bất thụ vì ngựa có 64 nhiễm sắc thể, lừa có 62, còn la có 63 nhiễm sắc thể lẻ, không phân li bình thường trong giảm phân để tạo giao tử.
Ngoài con đường cách li địa lí, loài mới còn có thể hình thành ngay trong cùng một khu vực (hình thành loài cùng vực) nhờ cách li sinh thái hoặc đa bội hóa — đặc biệt phổ biến ở thực vật.
Một cây bị đột biến đa bội (ví dụ tứ bội 4n) không giao phối được với cây lưỡng bội 2n gốc vì con lai tam bội 3n bất thụ — chỉ sau một thế hệ, một loài mới đã ra đời ngay cạnh loài bố mẹ.
Đây là cách hình thành loài nhanh nhất mà khoa học từng ghi nhận, và con người đã vô tình tạo ra nhiều loài cây trồng đa bội như vậy trong lịch sử nông nghiệp.
Về chiều hướng, tiến hóa diễn ra theo ba hướng lớn: thích nghi ngày càng hoàn thiện với môi trường, đa dạng về số lượng loài và ổ sinh thái, và tổ chức cơ thể ngày càng phức tạp ở một số nhánh.
Nhưng hãy nhớ: phức tạp hóa không phải là đích đến bắt buộc — nhiều loài kí sinh đã tiến hóa theo hướng đơn giản hóa, mất hẳn cơ quan tiêu hóa vì sống nhờ vật chủ.
Tiến hóa không leo một cái thang có sẵn; nó tỏa ra mọi hướng như cành cây, và nhánh nào thích nghi thì tồn tại.
9. Ví dụ giải chi tiết — làm từng bước, không nhảy cóc
Ví dụ 1. Một quần thể đang ở trạng thái cân bằng Hardy–Weinberg, trong đó 9% số cá thể mang kiểu hình lặn do gen a quy định. Tính tần số các alen và tần số các kiểu gen của quần thể.
Bước 1: Kiểu hình lặn chỉ xuất hiện ở kiểu gen aa, nên tần số kiểu gen aa là q² = 0,09.
Bước 2: Lấy căn bậc hai: tần số alen lặn q = √0,09 = 0,3.
Bước 3: Tần số alen trội p = 1 − q = 1 − 0,3 = 0,7.
Bước 4: Tần số kiểu gen AA = p² = 0,7² = 0,49; tần số kiểu gen Aa = 2pq = 2 × 0,7 × 0,3 = 0,42.
Đáp số: p = 0,7; q = 0,3; AA = 49%; Aa = 42%; aa = 9%.
Kiểm tra lại: 0,49 + 0,42 + 0,09 = 1 — đúng bằng 1.
Ví dụ 2. Một quần thể có 1.000 cá thể gồm 360 cá thể kiểu gen AA, 480 cá thể kiểu gen Aa và 160 cá thể kiểu gen aa. Tính tần số các alen và kiểm tra xem quần thể có đang ở trạng thái cân bằng Hardy–Weinberg không.
Bước 1: Tổng số alen trong quần thể là 2 × 1.000 = 2.000.
Bước 2: Số alen A = 2 × 360 + 480 = 1.200, nên tần số alen A là p = 1.200 : 2.000 = 0,6.
Bước 3: Số alen a = 2 × 160 + 480 = 800, nên tần số alen a là q = 800 : 2.000 = 0,4.
Bước 4: Tần số kiểu gen kì vọng theo Hardy–Weinberg: AA = p² = 0,36 (360 cá thể), Aa = 2pq = 0,48 (480 cá thể), aa = q² = 0,16 (160 cá thể).
Đáp số: p = 0,6; q = 0,4; số liệu quan sát trùng khớp hoàn toàn với số liệu kì vọng — quần thể đang ở trạng thái cân bằng Hardy–Weinberg.
Kiểm tra lại: p + q = 0,6 + 0,4 = 1; tổng số cá thể kì vọng 360 + 480 + 160 = 1.000 — khớp với đề bài.
Ví dụ 3. Một quần thể thực vật ban đầu gồm toàn cây có kiểu gen Aa. Cho quần thể này tự thụ phấn liên tục. Tính tỉ lệ kiểu gen dị hợp Aa sau 3 thế hệ tự thụ phấn và cho biết tần số alen có thay đổi không.
Bước 1: Sau mỗi thế hệ tự thụ phấn, tỉ lệ dị hợp giảm đi một nửa: sau 1 thế hệ Aa = 50%, sau 2 thế hệ Aa = 25%, sau 3 thế hệ Aa = 12,5%.
Bước 2: Tỉ lệ đồng hợp tăng tương ứng: sau 3 thế hệ, AA = aa = (100% − 12,5%) : 2 = 43,75%.
Bước 3: Tần số alen: ban đầu p = q = 0,5. Sau tự thụ phấn, số alen A và alen a trong quần thể không mất đi mà chỉ sắp xếp lại thành các kiểu gen khác nhau, nên p = q = 0,5 vẫn giữ nguyên.
Đáp số: sau 3 thế hệ tự thụ phấn, Aa = 12,5%, AA = aa = 43,75%; tần số alen không thay đổi.
Kiểm tra lại: 43,75% + 12,5% + 43,75% = 100%; đây chính là minh họa cho quy tắc giao phối không ngẫu nhiên làm thay đổi tần số kiểu gen nhưng không đổi tần số alen.
Ví dụ 4. Trong một quần thể, alen lặn a gây chết khi ở trạng thái đồng hợp aa, tức chọn lọc tự nhiên loại bỏ hoàn toàn kiểu gen aa. Ban đầu tần số alen a là q₀ = 0,4. Tính tần số alen a sau 1 thế hệ và sau 5 thế hệ chọn lọc.
Bước 1: Khi chọn lọc loại bỏ hoàn toàn kiểu gen aa, tần số alen a ở thế hệ sau được tính bằng công thức q₁ = q₀ : (1 + q₀).
Bước 2: Sau 1 thế hệ: q₁ = 0,4 : (1 + 0,4) = 0,4 : 1,4 ≈ 0,286.
Bước 3: Sau n thế hệ chọn lọc liên tục, công thức tổng quát là qn = q₀ : (1 + n × q₀). Sau 5 thế hệ: q₅ = 0,4 : (1 + 5 × 0,4) = 0,4 : 3 ≈ 0,133.
Đáp số: sau 1 thế hệ q ≈ 0,286; sau 5 thế hệ q ≈ 0,133.
Kiểm tra lại: tần số alen a giảm chậm dần theo thời gian (0,4 → 0,286 → 0,133) vì alen lặn "trốn" trong các cá thể dị hợp Aa mà chọn lọc không loại bỏ được — đó là lí do các bệnh di truyền lặn rất khó bị loại bỏ hoàn toàn khỏi quần thể.
Ví dụ 5. Một quần thể có 200 cá thể, tần số alen A là 0,2. Có 50 cá thể nhập cư từ quần thể khác đến, tất cả đều mang kiểu gen AA. Tính tần số alen A của quần thể sau khi nhập cư.
Bước 1: Tổng số alen trong quần thể ban đầu là 2 × 200 = 400, trong đó số alen A là 0,2 × 400 = 80.
Bước 2: 50 cá thể nhập cư kiểu gen AA mang theo 2 × 50 = 100 alen A.
Bước 3: Sau nhập cư, quần thể có 250 cá thể với tổng số alen là 500, trong đó số alen A là 80 + 100 = 180.
Bước 4: Tần số alen A mới là 180 : 500 = 0,36.
Đáp số: tần số alen A tăng từ 0,2 lên 0,36 sau một đợt nhập cư.
Kiểm tra lại: tần số alen a mới là 1 − 0,36 = 0,64; số alen a là 0,64 × 500 = 320, đúng bằng 400 − 80 = 320 alen a ban đầu vì cá thể nhập cư không mang alen a nào.
Ví dụ 6. Một quần thể thực vật có 1.000 cây gồm 300 cây kiểu gen AA, 500 cây kiểu gen Aa và 200 cây kiểu gen aa. Quần thể này có đang ở trạng thái cân bằng Hardy–Weinberg không? Vì sao?
Bước 1: Tính tần số alen: tổng số alen là 2.000; số alen A = 2 × 300 + 500 = 1.100 nên p = 1.100 : 2.000 = 0,55; số alen a = 2 × 200 + 500 = 900 nên q = 900 : 2.000 = 0,45.
Bước 2: Tần số kiểu gen kì vọng nếu quần thể cân bằng: AA = p² = 0,55² = 0,3025 (kì vọng 302,5 cây), Aa = 2pq = 2 × 0,55 × 0,45 = 0,495 (kì vọng 495 cây), aa = q² = 0,45² = 0,2025 (kì vọng 202,5 cây).
Bước 3: So sánh với số liệu quan sát: AA quan sát 300 so với kì vọng 302,5; Aa quan sát 500 so với kì vọng 495; aa quan sát 200 so với kì vọng 202,5.
Đáp số: quần thể gần như đang ở trạng thái cân bằng Hardy–Weinberg; chênh lệch nhỏ (vài cây) là do sai số lấy mẫu ngẫu nhiên, không đủ lớn để kết luận có nhân tố tiến hóa đang tác động mạnh.
Kiểm tra lại: tổng số cây kì vọng 302,5 + 495 + 202,5 = 1.000 — khớp với tổng số cây quan sát.
10. Lỗi sai thường gặp — biết trước để không mất điểm oan
Lỗi 1: Cho rằng chọn lọc tự nhiên tạo ra biến dị mới.
Nhiều bạn viết "môi trường khô hạn đã tạo ra alen chịu hạn ở cây".
Sai hoàn toàn: alen chịu hạn xuất hiện trước nhờ đột biến ngẫu nhiên; hạn hán chỉ làm cho cây mang alen đó sống sót nhiều hơn.
Cách tránh: nhớ thứ tự đúng — đột biến tạo biến dị trước, chọn lọc sàng lọc sau.
Lỗi 2: Nói "cá thể tiến hóa".
Một con chim không thể thay đổi tần số alen của chính nó trong đời sống.
Cách tránh: đơn vị của tiến hóa là quần thể — hãy nói "quần thể tiến hóa", "tần số alen thay đổi", không nói "cá thể tiến hóa".
Lỗi 3: Cho rằng tiến hóa là tiến bộ, loài sau "cao cấp" hơn loài trước.
Vi khuẩn ngày nay vẫn tồn tại và sinh sôi mạnh mẽ bên cạnh con người; một loài nấm đơn giản không hề "kém tiến hóa" hơn một con voi.
Cách tránh: tiến hóa chỉ có nghĩa là thích nghi với hoàn cảnh cụ thể, không có thang bậc cao — thấp giữa các loài đang sống.
Lỗi 4: Cho rằng giao phối không ngẫu nhiên làm thay đổi tần số alen.
Tự thụ phấn nhiều đời làm tỉ lệ dị hợp giảm mạnh, nhưng tần số alen A và a trong quần thể vẫn giữ nguyên.
Cách tránh: giao phối chỉ sắp xếp lại các alen thành kiểu gen khác nhau, không thêm hay bớt alen nào — hãy đối chiếu bảng ở mục 4.
Lỗi 5: Cho rằng alen trội luôn phổ biến hơn alen lặn.
Trội hay lặn chỉ nói lên cách alen biểu hiện ra kiểu hình, không nói lên độ phổ biến.
Cách tránh: alen lặn gây bệnh bạch tạng hiếm vì chọn lọc loại bỏ nó, nhưng alen lặn quy định nhóm máu O lại rất phổ biến — muốn biết phổ biến hay không phải tính tần số, không đoán từ tính trội – lặn.
Lỗi 6: Áp dụng định luật Hardy–Weinberg cho mọi quần thể thực.
Định luật chỉ đúng cho quần thể lí tưởng thỏa mãn cả 5 điều kiện; quần thể thực hầu như luôn vi phạm ít nhất một điều kiện.
Cách tránh: dùng Hardy–Weinberg làm mốc so sánh — nếu số liệu thực lệch khỏi kì vọng thì đó là tín hiệu có nhân tố tiến hóa đang tác động, chứ không phải công thức sai.
11. Bài tập tự luyện — làm rồi mới xem đáp án nhé
Câu 1. Một quần thể đang ở trạng thái cân bằng Hardy–Weinberg, trong đó 4% số cá thể mang kiểu hình lặn do gen a quy định. Tần số của alen trội A là bao nhiêu?
A. 0,8
B. 0,2
C. 0,6
D. 0,96
→ Đáp án: A. Giải thích: Kiểu hình lặn chỉ xuất hiện ở kiểu gen aa nên q² = 0,04, suy ra tần số alen lặn q = √0,04 = 0,2; tần số alen trội p = 1 − q = 0,8. Đáp án B (0,2) là tần số alen lặn q, không phải alen trội — nhầm p với q. Đáp án C (0,6) không có cơ sở nào từ số liệu đề bài. Đáp án D (0,96) là tần số kiểu hình trội (p² + 2pq = 0,64 + 0,32), không phải tần số alen trội.
Câu 2. Nhân tố tiến hóa nào sau đây KHÔNG làm thay đổi tần số alen của quần thể?
A. Đột biến
B. Di – nhập gen
C. Giao phối không ngẫu nhiên
D. Chọn lọc tự nhiên
→ Đáp án: C. Giải thích: Giao phối không ngẫu nhiên chỉ sắp xếp lại các alen thành các kiểu gen khác nhau — tăng tỉ lệ đồng hợp, giảm tỉ lệ dị hợp — nhưng tổng số alen mỗi loại trong quần thể không đổi nên tần số alen giữ nguyên. Đáp án A sai vì đột biến tạo ra alen mới nên làm thay đổi tần số alen. Đáp án B sai vì di – nhập gen đưa alen vào hoặc mang alen ra khỏi quần thể. Đáp án D sai vì chọn lọc tự nhiên làm thay đổi tần số alen theo hướng thích nghi.
Câu 3. Ở bướm đêm Biston betularia tại Anh, dạng cánh sẫm màu vốn hiếm hoi đã trở nên phổ biến khi khói than làm thân cây đen lại, rồi lại giảm xuống khi không khí sạch trở lại. Hiện tượng này là minh chứng trực tiếp cho nhân tố tiến hóa nào?
A. Đột biến gen
B. Chọn lọc tự nhiên
C. Phiêu bạt di truyền
D. Di – nhập gen
→ Đáp án: B. Giải thích: Môi trường thay đổi làm thay đổi hướng chọn lọc: khi thân cây đen, bướm cánh sẫm ngụy trang tốt hơn nên sống sót và sinh sản nhiều hơn; khi thân cây sáng lại, lợi thế đổi chiều. Đây là chọn lọc vận động đổi hướng theo môi trường. Đáp án A sai vì đột biến chỉ tạo ra dạng cánh sẫm từ trước, không giải thích được sự lên xuống của tần số. Đáp án C sai vì sự thay đổi này có hướng xác định theo môi trường, không phải ngẫu nhiên. Đáp án D sai vì không có sự di cư nào của bướm giữa các quần thể trong ví dụ này.
Câu 4. Một quần thể có 1.000 cá thể gồm 400 cá thể kiểu gen AA, 400 cá thể kiểu gen Aa và 200 cá thể kiểu gen aa. Tần số của alen a trong quần thể là bao nhiêu?
A. 0,2
B. 0,4
C. 0,6
D. 0,8
→ Đáp án: B. Giải thích: Tổng số alen là 2 × 1.000 = 2.000; số alen a = 2 × 200 + 400 = 800, nên tần số alen a là q = 800 : 2.000 = 0,4. Đáp án A (0,2) là tần số kiểu gen aa, không phải tần số alen a — nhầm tần số kiểu gen với tần số alen. Đáp án C (0,6) là tần số alen A (p = 1 − 0,4). Đáp án D (0,8) là tỉ lệ cá thể mang alen A tính theo kiểu hình, không phải tần số alen.
Câu 5. Hai quần thể cùng loài bị một dãy núi cao ngăn cách trong thời gian dài, tích lũy nhiều khác biệt di truyền. Khi dãy núi không còn là trở ngại, hai nhóm gặp lại nhau nhưng không giao phối được để sinh con hữu thụ. Đây là ví dụ về quá trình nào?
A. Hình thành loài mới nhờ cách li địa lí
B. Giao phối không ngẫu nhiên
C. Phiêu bạt di truyền
D. Tiến hóa hội tụ
→ Đáp án: A. Giải thích: Cách li địa lí đã ngăn dòng gen giữa hai quần thể, mỗi quần thể tiến hóa độc lập và tích lũy khác biệt di truyền đến mức xuất hiện cách li sinh sản — đúng trình tự hình thành loài mới bằng con đường địa lí. Đáp án B sai vì giao phối không ngẫu nhiên diễn ra trong nội bộ một quần thể, không tạo ra hai loài. Đáp án C sai vì phiêu bạt di truyền chỉ là một nhân tố làm thay đổi tần số alen, không phải tên của quá trình hình thành loài. Đáp án D sai vì tiến hóa hội tụ là các loài không họ hàng cùng giống nhau do thích nghi với môi trường giống nhau, ngược với trường hợp này.
| Câu | 1 | 2 | 3 | 4 | 5 |
|---|---|---|---|---|---|
| Đáp án | A | C | B | B | A |
12. Câu hỏi thường gặp về tiến hóa
Vì sao nói quần thể mới là đơn vị tiến hóa, không phải cá thể? Vì tiến hóa được định nghĩa bằng sự thay đổi tần số alen và thành phần kiểu gen — những đại lượng chỉ có ý nghĩa ở cấp độ quần thể. Một cá thể có thể sống lâu hay chết sớm, nhưng nó không thể tự thay đổi tần số alen của chính mình; chỉ có quần thể mới thay đổi tần số alen qua các thế hệ sinh sản.
Con người có còn tiến hóa không? Có. Tiến hóa không dừng lại khi một loài đã "hoàn thiện". Ở người hiện đại, các nhà khoa học vẫn ghi nhận sự thay đổi tần số alen qua các thế hệ — ví dụ alen giúp tiêu hóa sữa ở người trưởng thành ngày càng phổ biến ở các quần thể chăn nuôi bò sữa, hay tần số alen kháng bệnh sốt rét ở vùng có bệnh sốt rét lưu hành. Y học hiện đại làm giảm áp lực chọn lọc ở một số tính trạng, nhưng chọn lọc vẫn tác động lên nhiều tính trạng khác.
Nếu tổ tiên chung của người và tinh tinh đã tuyệt chủng, vì sao tinh tinh vẫn còn tồn tại? Vì con người không tiến hóa từ tinh tinh ngày nay — cả hai cùng tiến hóa từ một tổ tiên chung sống cách đây khoảng 6–7 triệu năm, rồi tách thành hai nhánh riêng. Tinh tinh là "anh em họ" của người, không phải "ông bà" của người; mỗi nhánh thích nghi với môi trường riêng của mình.
Đột biến có hại thì vì sao nó vẫn tồn tại trong quần thể? Vì phần lớn alen lặn có hại "trốn" trong các cá thể dị hợp tử khỏe mạnh mà chọn lọc không nhìn thấy được — như ví dụ 4 ở mục 9, chọn lọc loại bỏ hoàn toàn kiểu gen aa vẫn chỉ làm tần số alen a giảm chậm dần từ 0,4 xuống 0,133 sau 5 thế hệ. Ngoài ra, một số alen có hại ở dạng đồng hợp lại có lợi ở dạng dị hợp, như alen hồng cầu hình liềm giúp chống sốt rét khi ở trạng thái dị hợp.
Học thuyết tiến hóa có mâu thuẫn với việc nhiều loài vẫn giữ nguyên hình dạng hàng trăm triệu năm không? Không. Khi môi trường ổn định, chọn lọc ổn định sẽ giữ nguyên kiểu hình tối ưu — như cá mập hay cá sấu vẫn giữ dạng cơ thể thành công của tổ tiên. Tiến hóa không bắt buộc mọi loài phải thay đổi liên tục; loài chỉ thay đổi mạnh khi môi trường thay đổi hoặc khi có cơ hội chiếm ổ sinh thái mới.
Kết luận: tiến hóa là câu chuyện của cả quần thể, viết bằng tần số alen
Đi hết chuyên đề này, bạn đã thấy tiến hóa không phải một ý niệm trừu tượng xa vời.
Nó bắt đầu từ những chiếc mỏ chim sẻ trên đảo Galápagos, đi qua bốn trụ cột của Darwin, được di truyền học hiện đại khoác cho bộ khung quần thể với vốn gen và tần số alen, được đo đếm bằng công thức Hardy–Weinberg, và được xác nhận bởi hóa thạch, giải phẫu so sánh, phôi sinh học và trình tự ADN.
Chỉ cần nhớ bốn công cụ — năm nhân tố tiến hóa, ba hình thức chọn lọc, định luật Hardy–Weinberg và các bằng chứng tiến hóa — bạn có thể giải thích và tính toán được hầu hết các bài tập tiến hóa trong chương trình Sinh học 12.
Muốn đi xa hơn, hãy nối chuyên đề này với các công thức di truyền sẽ dùng ngay trong các bài tập: tính số loại giao tử để thấy biến dị tổ hợp phong phú ra sao, tính số tế bào con sau nguyên phân để hiểu quần thể tăng trưởng như thế nào, rồi đối chiếu số nuclêôtit của gen và chiều dài gen để thấy đột biến có bao nhiêu "đất diễn" trên một gen.
Làm lại 5 câu tự luyện cho đến khi đúng cả 5 câu không cần nhìn đáp án, rồi thử tự tính một bài toán Hardy–Weinberg mới: quần thể có 25% cá thể mang kiểu hình lặn thì tần số alen trội và tần số kiểu gen dị hợp là bao nhiêu — làm được việc đó là bạn đã thực sự làm chủ chuyên đề tiến hóa.
- Tiến hóa là gì và câu chuyện chim sẻ Darwin ở Galápagos
- Học thuyết Darwin và học thuyết tiến hóa tổng hợp hiện đại
- Năm nhân tố tiến hóa và ba hình thức chọn lọc tự nhiên
- Định luật Hardy–Weinberg: p + q = 1 và p² + 2pq + q² = 1
- Bốn nhóm bằng chứng tiến hóa: hóa thạch, giải phẫu so sánh, phôi sinh học, sinh học phân tử
- Hình thành loài mới: cách li địa lí và cách li sinh sản
- Ví dụ giải chi tiết, lỗi sai thường gặp, bài tập tự luyện và FAQ
- Chiều hướng tiến hóa và những hiểu lầm cần tránh
Làm được như vậy, chuyên đề tiến hóa sẽ thực sự là của bạn — và lần sau nhìn một đàn chim sẻ trên cành, bạn sẽ không chỉ thấy những con chim, mà thấy cả một quá trình chọn lọc đã âm thầm diễn ra suốt hàng triệu năm.